
客户合作文章基本信息
研究背景
铝(Al)在中性及碱性土壤中以不溶的硅铝酸盐或氧化物等无毒形式存在。当土壤pH降至5.5以下时,铝会溶解为有毒的Al3+,严重抑制根的生长,最终降低作物产量。酸性土壤中的铝影响全球约一半的可耕地。
植物演化出外部和内部两种铝中毒解毒策略。外部解毒主要通过根系分泌苹果酸、柠檬酸等有机酸螯合Al3+,阻止其进入对铝最敏感的根尖。内部解毒则是将铝吸收后螯合隔离于液泡中。在拟南芥中,质膜转运蛋白ALMT1介导的苹果酸分泌,转录因子STOP1调控ALMT1等抗铝基因表达,而液泡膜上的ABC转运蛋白复合体STAR1/ALS3则负责将铝-苹果酸复合物隔离到液泡,实现内部解毒,但协调外部解毒与内部解毒两条途径的调控机制尚不清楚。
一氧化氮(NO)可通过S-亚硝基化(NO基团共价结合到蛋白半胱氨酸巯基上)修饰靶蛋白改变。尽管有研究表明铝改变根中NO产生、外源NO可增强植物抗铝性,但其分子机制仍缺乏研究。近日,来自中科院的团队从一个抗铝性下降的突变株系rae8入手,证明NO介导STOP1和STAR1的S-亚硝基化,促进STOP1降解,稳定STAR1,从而协调外部与内部铝中毒缓解。
研究结果
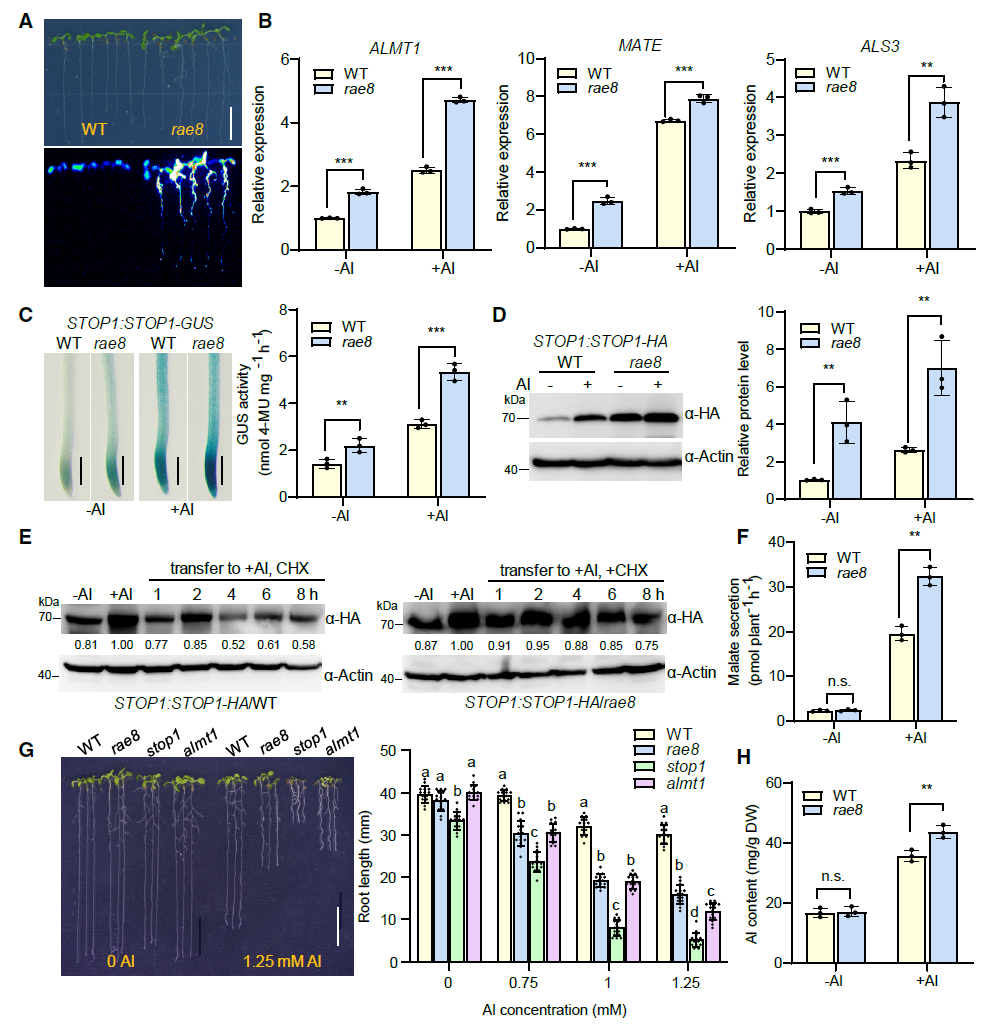
为了解析ALMT1表达的上有调控机制,研究人员通过在ALMT1启动子区域整合荧光素酶,构建了荧光素酶报告株系,利用甲基磺酸乙酯(EMS)诱导这些株系随机单碱基突变,并检测荧光素酶信号、qRT-PCR检测抗铝相关基因表达,筛选出ALMT1高表达的株系。结果显示rae8突变体LUC信号增强,STOP1调控的基因(ALMT1、MATE、ALS3)表达均显著高于野生型(WT),而非STOP1调控的基因(STOP1、STAR1、ALS1)表达不变。
研究人员通过杂交构建表达带GUS和HA标签的STOP1蛋白的rae8植株,通过GUS染色检测STOP1蛋白水平,同时用蛋白合成抑制剂放线菌酮(CHX,A8244)处理根系,再通过Western blot检测处理前后的STOP1蛋白水平,随后检测苹果酸分泌量、不同铝浓度下的根长及根中铝含量。结果显示,rae8中STOP1-GUS和STOP1-HA蛋白水平均高于WT。CHX抑制蛋白合成后,rae8中STOP1-HA的降解速度比WT更慢。rae8在铝下苹果酸分泌显著高于WT,但根的长度显著小于WT,根内铝积累量更高。
综上所述,rae8突变增强了STOP1相关的基因表达、STOP1的稳定性和苹果酸分泌,却降低了抗铝性。
为了找出rae8突变体中的关键突变基因,研究人员先用rae8与WT杂交构建F2群体,统计后代中荧光信号增强个体的比例以判断突变的遗传性质;随后收集大量高荧光F2单株混合提取DNA进行全基因组测序,通过与参考基因组比对(MutMap策略)初步定位候选区段,再开发分子标记对更多F2个体做连锁分析和精细定位。结果显示,96株F2幼苗中23株表现高荧光,符合3:1分离比,说明表型由单个隐性突变控制。候选区段被缩小到2号染色体上的小区间,其中CNX2基因(At2g31955)内一处C→T碱基替换(S307F)所对应的标记与突变表型完全共分离。
为了确认rae8表型由CNX2 S307F突变导致,研究人员把野生型CNX2基因转回rae8突变体,检测其基因表达和抗铝性是否恢复正常,同时用RNAi在野生型中降低CNX2表达。结果显示,补回正常CNX2后,植株的STOP1调控基因表达和抗铝性都恢复到了WT水平。而CNX2被RNAi敲低的植株则与rae8一样抗铝性下降。
为了解CNX2的表达特征和功能,研究人员检测了各组织中CNX2的mRNA水平及其对铝的响应,并构建了表达CNX2-GUS融合蛋白的株系,用GUS染色观察它主要在哪些部位表达。结果显示,CNX2在所有检测组织中均表达、根尖信号最强,且表达量不受铝或突变本身影响。
CNX2是钼辅因子(Moco)合成通路关键酶。为了检验S307F突变是否影响Moco合成,研究人员分别在加铝和不加铝两种条件下测定了rae8中依赖Moco的醛氧化酶和硝酸还原酶的活性。结果显示,S307F中醛氧化酶活性完全丧失、硝酸还原酶 活性显著低于WT,而铝会提高WT中的硝酸还原酶活性。
综上所述,rae8的关键突变基因是参与Moco合成的CNX2,该突变阻碍Moco合成,进而导致Moco下游的NR活性下降。
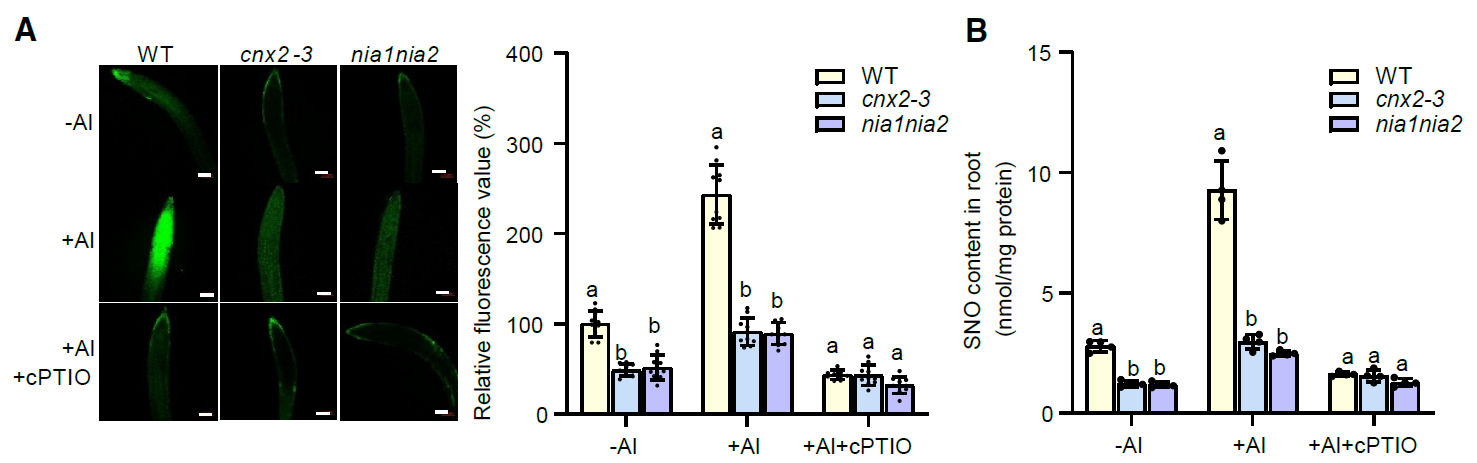
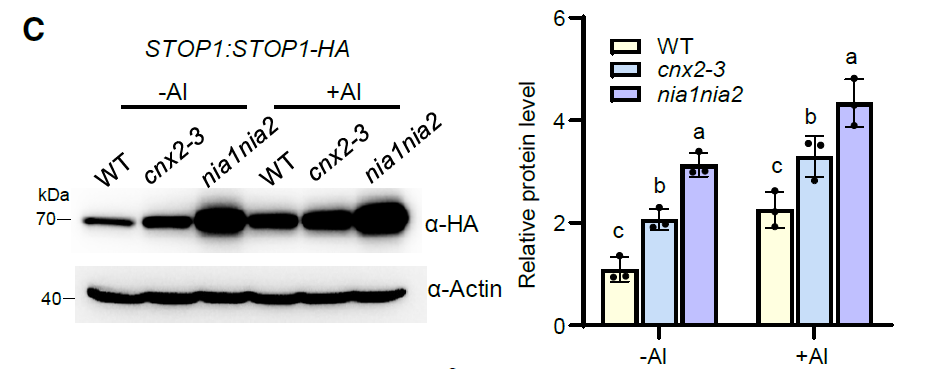
NR是植物产生NO的主要酶源,NR活性下降,预示NO产生会随之减少。为了探究CNX2突变是否通过NO途径调控STOP1,研究人员用NO荧光探针对WT、rae8(CNX2 S307F突变体)和nia1nia2(硝酸还原酶NIA1/NIA2缺失的双突变体)的根进行染色并用NO清除剂cPTIO处理作为对照,比较加铝与不加铝、以及不同酸碱度下的染色差异,同时测定根中总S-亚硝基化水平。结果显示,CNX2 S307F突变体和nia1nia2根中的NO和总S-亚硝基化水平均显著低于WT,且铝和酸性环境都能诱导NO产生。
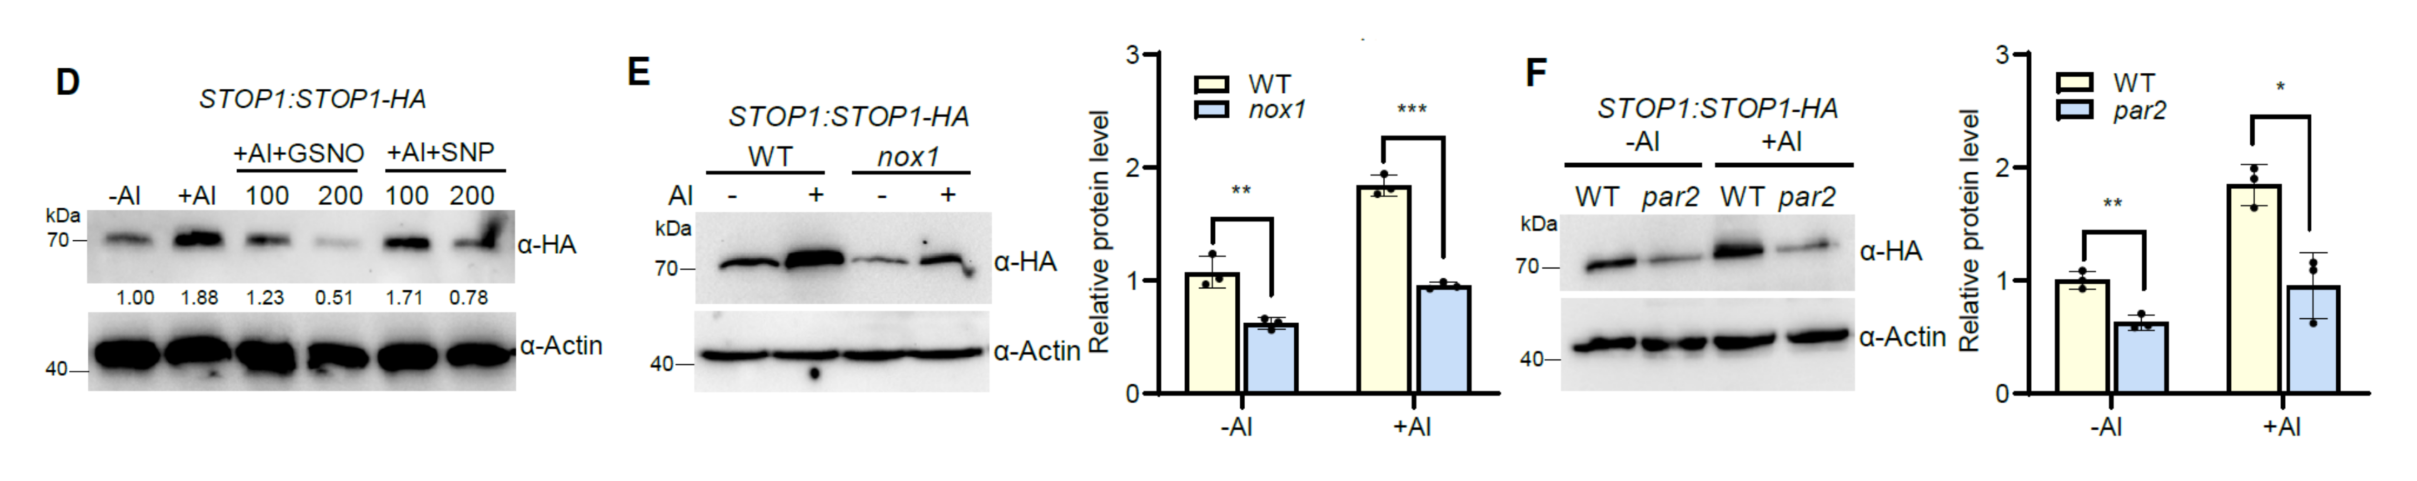
为了确认STOP1的积累是由NO不足而非CNX2突变造成,研究人员通过杂交构建了携带nia1nia2突变、nox1突变、par2/gsnor1突变(nox1突变和par2/gsnor1突变均为导致内源性NO高的NO代谢相关基因突变)并表达STOP1-HA的植株,同时用可分解释放NO的GSNO和SNP处理WT的根系,分别在加铝和不加铝两种条件下检测STOP1-HA水平、STOP1调控基因表达、苹果酸分泌和抗铝性。结果显示nia1nia2与CNX2 S307F突变体表型一致:STOP1调控基因表达升高、STOP1-HA积累增加、苹果酸分泌增强但抗铝性降低。GSNO和SNP处理均可促进STOP1-HA降解,nox1和par2背景中STOP1-HA水平在显著降低。
综上所述,NO与STOP1蛋白积累的负相关,NO减少导致STOP1过度积累。
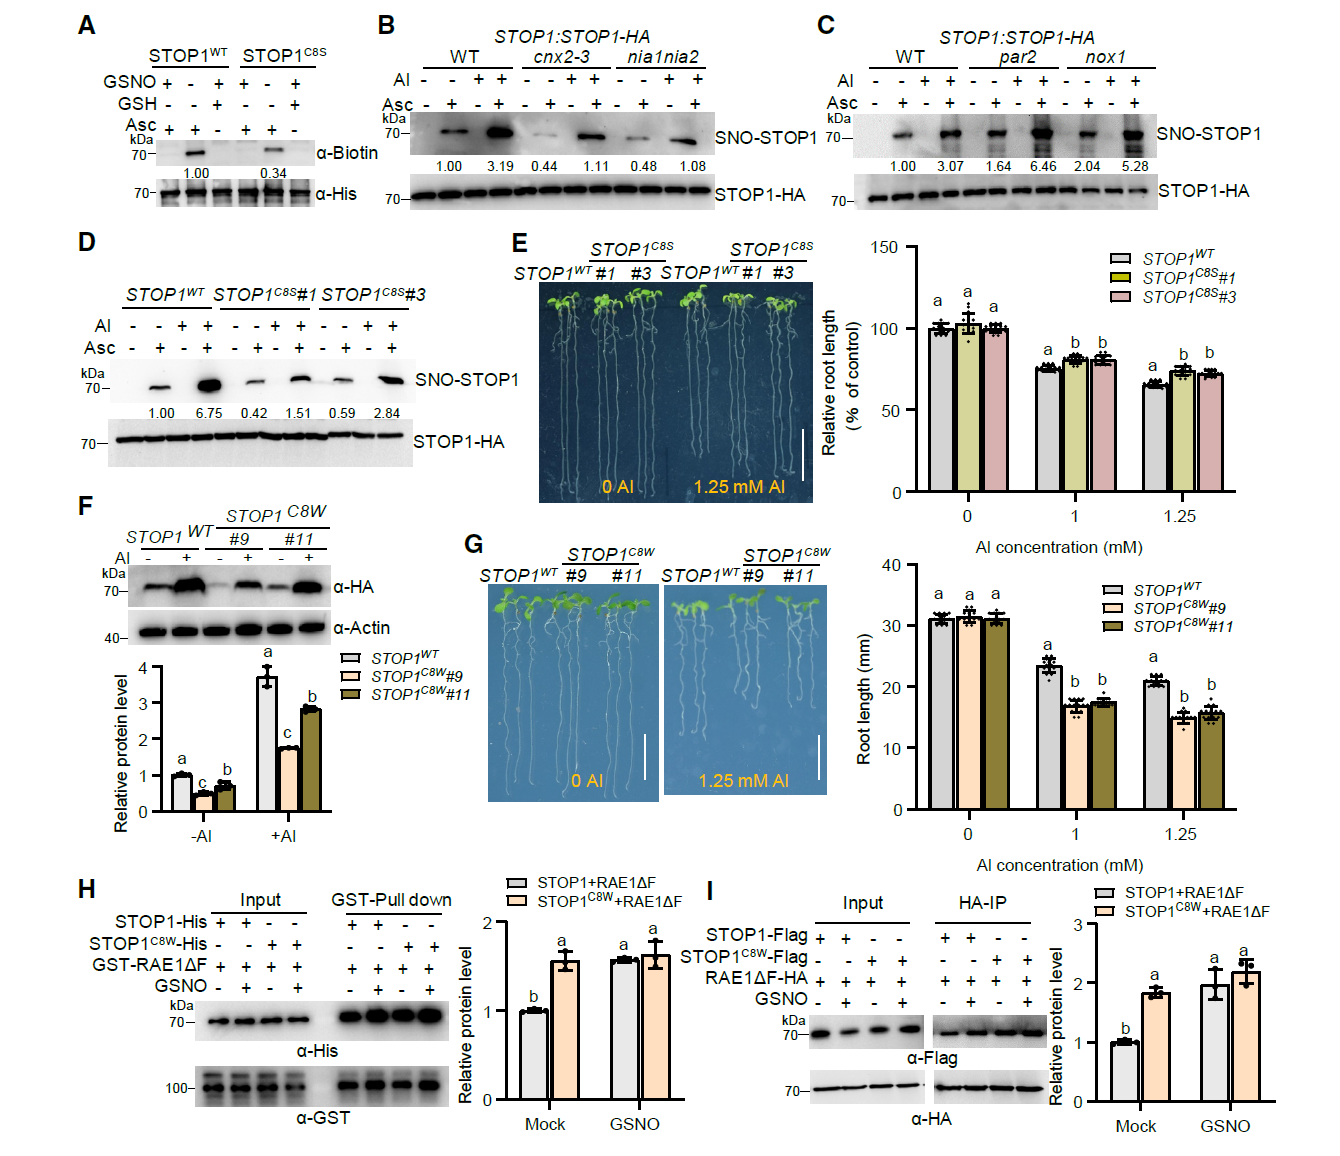
为了验证NO是否通过S-亚硝基化调控STOP1,研究人员把纯化的STOP1蛋白与GSNO一起孵育,用基于Biotin-HPDP(A8008 )标记的生物素转换法检测它是否被S-亚硝基化,并用GPS-SNO 1.0软件预测结合质谱确定修饰发生在哪个氨基酸,随后分别在加铝和不加铝两种条件下检测在之前实验中构建的植株中的STOP1-HA修饰水平。结果显示,STOP1在体内外均能发生S-亚硝基化,铝可以增强该修饰。CNX2 S307F突变体和nia1nia2中修饰大幅减少而高NO突变体中增加。预测与质谱结果显示STOP1上修饰发生频率最高的位点是Cys-8。
为了明确Cys-8亚硝基化的功能,研究人员构建了亚硝基化缺陷型STOP1 C8S和根据已有文献设计的模拟亚硝基化的STOP1 C8W株系,别在加铝和不加铝两种条件下检测STOP1调控基因表达、STOP1蛋白积累和抗铝表型。结果显示,C8S株系中STOP1 S-亚硝基化显著减少,STOP1调控基因表达轻微升高、STOP1蛋白积累升高、抗铝性中等增强。而C8W株系STOP1调控基因表达降低、STOP1蛋白减少、对铝更敏感。
为了探究Cys-8亚硝基化促进STOP1降解的途径,研究人员用蛋白酶体抑制剂MG132(A2585)处理根系,并通过pull-down和原生质体Co-IP检测STOP1与F-box蛋白RAE1 C端片段(RAE1ΔF,含有F-box的全长RAE1会自我降解)和STAR1的互作。结果显示MG132处理使C8W株系中的STOP1积累恢复到WT水平,说明降解经由26S蛋白酶体途径。C8W与RAE1ΔF互作强于WT,GSNO处理促进SWT与RAE1ΔF的互作。S-亚硝基化同样增强STOP1与STAR1的互作。
综上所述,NO通过介导STOP1 Cys-8位点的S-亚硝基化,增强其与RAE1和STAR1的互作,从而经26S蛋白酶体途径加速STOP1降解。
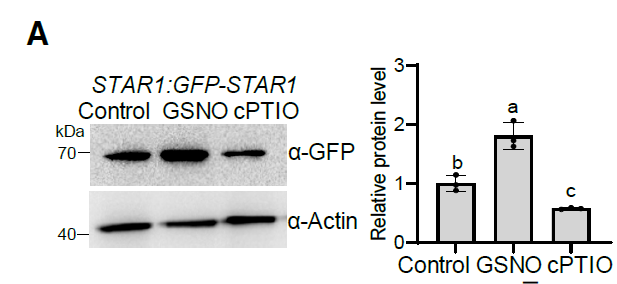
已有研究发现,STAR1功能缺失时,ALMT1表达升高会增加铝敏感性,与rae8和nia1nia2表型类似。为了检验这两个突变体的铝敏感性是否与STAR1有关,研究人员用cPTIO和GSNO处理表达了带GFP标签STAR1的植株,同时通过杂交构建了表达带GFP标签的STAR1的rae8和nia1nia2,再检测其中的STAR1蛋白量。结果显示,cPTIO处理促进STAR1降解,GSNO处理则使STAR1积累增加。 rae8和nia1nia2中的STAR1蛋白量均显著低于WT。
综上所述,NO与STAR1蛋白积累正相关。
为了确定NO引起的STAR1上调是否由S-亚硝基化介导以及修饰发生的位点,研究人员把纯化的STAR1蛋白与GSNO一起孵育,用基于Biotin-HPDP(A8008 )标记的生物素转换法检测其S-亚硝基化,并将STAR1中唯一的半胱氨酸(Cys-231)突变为丝氨酸(C231S)后重复检测,随后分别在加铝和不加铝两种条件下检测表达带GFP标签STAR1的WT、rae8、nia1nia2植株体内STAR1的S-亚硝基化水平。结果显示,STAR1在体外能被S-亚硝基化,C231S突变后修饰完全消失,说明修饰特异地发生在Cys-231。植株体内的STAR1同样存在S-亚硝基化,铝能增强该修饰,而rae8和nia1nia2中该修饰大幅减少。
为了验证STAR1 S-亚硝基化的功能和STAR1的降解途径,研究人员构建了表达带GFP标签的STAR1 C231S和STAR1 C231W的两种STAR1缺失突变体,在加铝和不加铝两种条件下检测STAR1的修饰水平、蛋白积累量和抗铝性。结果显示,C231S的 S-亚硝基化修饰被完全阻断,STAR1蛋白量显著下降,且无法恢复抗铝性。C231W株系STAR1蛋白量中等升高,能大部分恢复抗铝性。
为了探究STAR1的降解途径,研究人员分别用26S蛋白酶体抑制剂MG132(A2585)和液泡降解途径抑制剂E64d处理各株系根系。结果显示MG132和E64d均不能阻止C231S的降解,说明该降解不依赖于26S蛋白酶体和液泡降解途径。此外,pull-down实验显示STAR1的S-亚硝基化会适度削弱其与STOP1的互作。
综上所述,NO亚硝基化STAR1的Cys-231位点,这一修饰维持STAR1蛋白稳定,也维持其内部解毒功能。

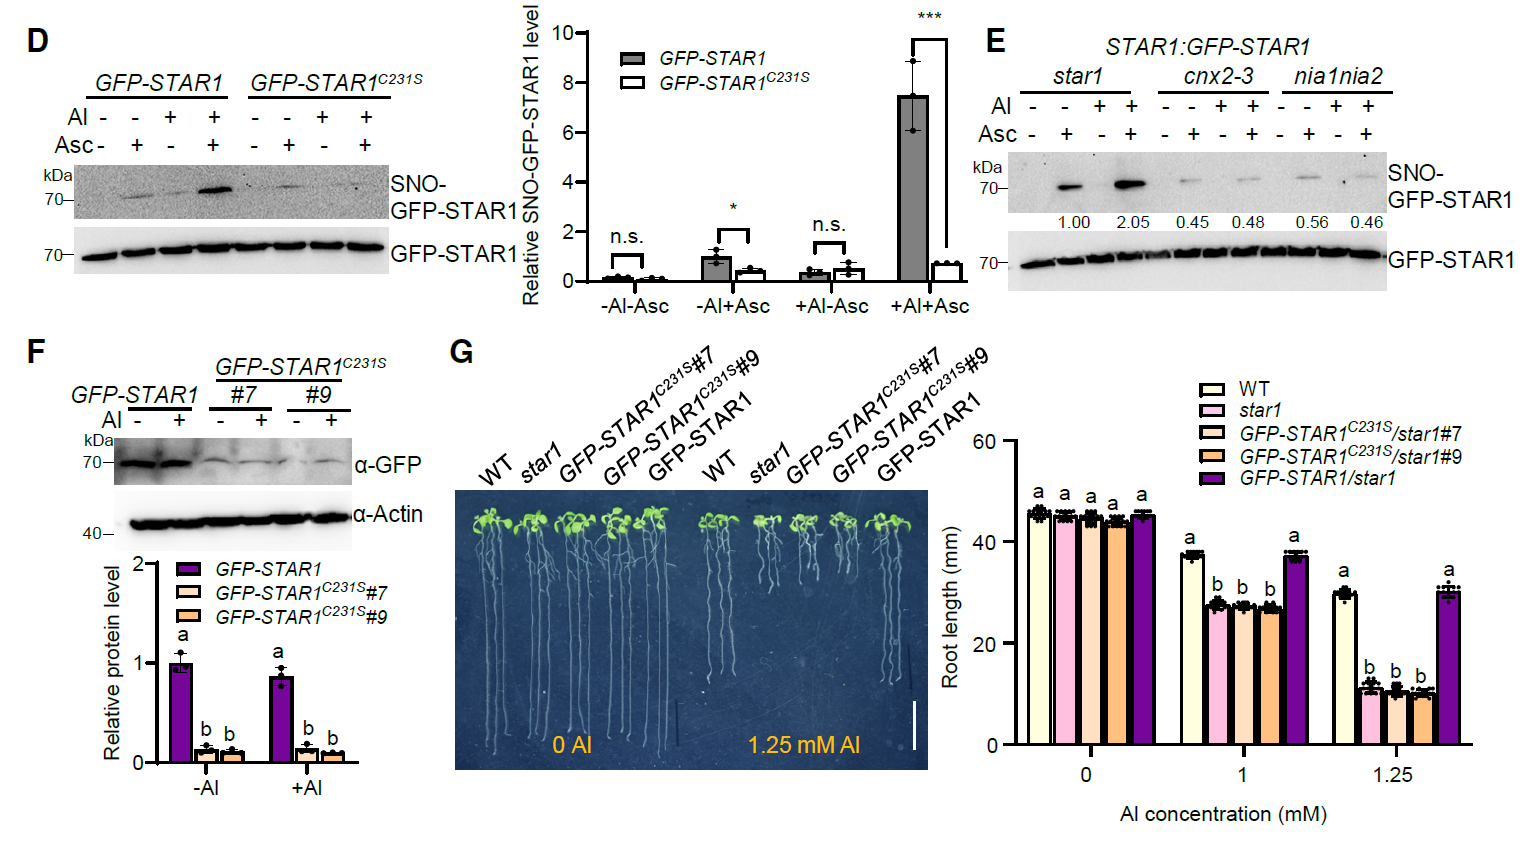
为了验证rae8和nia1nia2的铝敏感性是否源自STAR1不足,研究人员通过杂交,构建了表达带GFP标签STAR1(表达量约为野生型两倍)和STAR1过表达的rae8和nia1nia2株系,测定不同铝浓度下的根长。结果显示,表达带GFP标签的STAR1使两者的铝敏感性显著下降,过量表达STAR1甚至完全恢复rae8的抗铝性。
为了检测是否有更多铝进入突变体细胞内部,研究人员将加铝处理的根系分离为细胞汁(胞内)和细胞壁两部分,分别测定加铝处理3、6、12小时后的铝含量。结果显示,rae8和nia1nia2在3小时后各时间点的细胞汁铝含量均高于WT,细胞壁铝含量在12小时也显著升高。
为了确认ALMT1表达升高(苹果酸分泌增加)是否促进铝吸收、加剧敏感性,研究人员在rae8中用RNAi敲低STOP1以压低ALMT1表达,检测抗铝性。结果显示,敲低株系的抗铝性部分恢复。
为了阻断铝-苹果酸复合物进入细胞的通道,研究人员通过杂交,构建了NIP1;1、NIP1;2(细胞膜上吸收铝-苹果酸复合物的通道蛋白)同时缺失的WT、rae8和nia1nia2,测定不同铝浓度下的根长。结果显示,NIP1;1和NIP1;2缺失降低野生型植株的抗铝性,却大幅恢复rae8和nia1nia2的抗铝性。
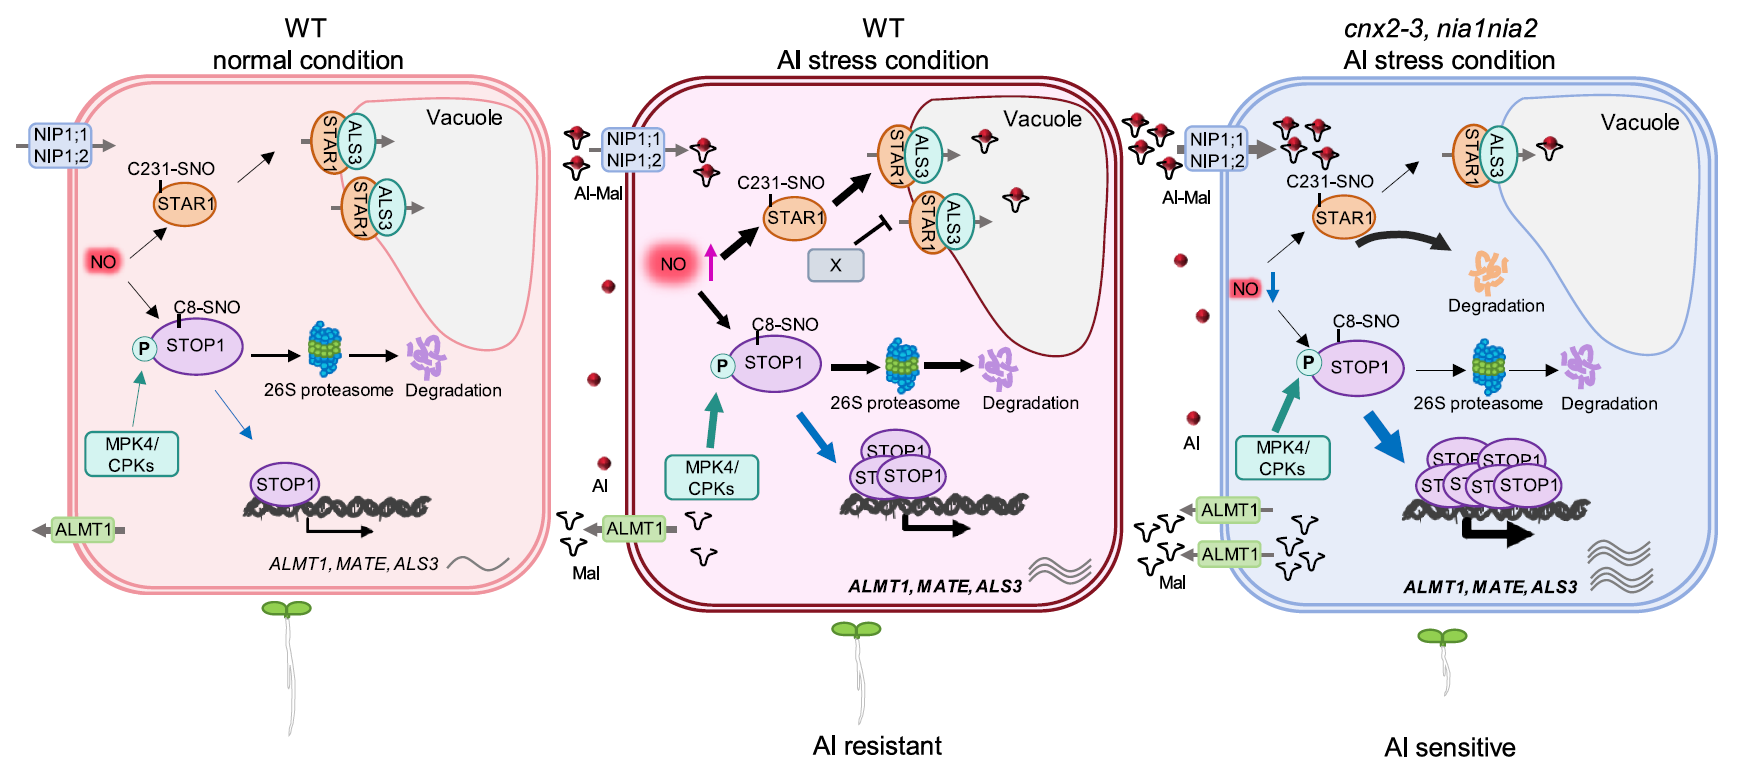
综上所述,rae8和nia1nia2的铝敏感性根源是STAR1不足,内部解毒因此受损,苹果酸分泌增加,更多铝-苹果酸复合物经NIP1;1/NIP1;2进入细胞,却因缺乏STAR1而无法进入液泡,反而加重内部铝中毒。

研究结论
本研究发现了CNX2 S307F突变阻断钼辅因子Moco合成,导致硝酸还原酶活性下降,内源NO不足,铝敏感性升高,并由此揭示了NO如何协调拟南芥的外部排斥与内部隔离两条铝中毒解毒途径。铝可以提高硝酸还原酶活性,NO随之增多。NO一方面介导转录因子STOP1的Cys-8位点S-亚硝基化,增强其与F-box蛋白RAE1的结合,经26S蛋白酶体加速STOP1降解,限制ALMT1介导的苹果酸分泌(外部排斥);另一方面介导STAR1的Cys-231位点S-亚硝基化并稳定该蛋白,让STAR1/ALS3复合体可以把经NIP1;1/NIP1;2内流的铝-苹果酸复合物隔离进液泡(内部解毒)。NO不足时,STOP1过度积累,苹果酸分泌过量;STAR1严重不足,内流的铝-苹果酸复合物无法进入液泡,导致铝敏感性升高。因此,STOP1-STAR1-NO轴可作为酸性土壤作物抗铝遗传改良的切入点。
引用产品及产品应用
APExBIO是本次研究中化学试剂的主要供应商之一,提供了多种用于验证各分子通路和细胞功能的关键试剂,具体产品及作用如下:
-左右滑动查看更多-


 沪公网安备 31011002003500
