
STV-C8: 一种性能超越临床LNP的新一代非病毒RNA递送平台
导语
RNA药物的瓶颈,很多时候并不在RNA本身,而在“怎么把它送进去”。过去几年,脂质纳米颗粒(LNP)把mRNA疫苗和肝脏RNA药物推到了临床中心,但它也带来了一个越来越清晰的问题:一旦离开肝脏,特别是面对免疫细胞、肺、肌肉、神经系统或特定病变细胞,递送效率、组织选择性和重复给药都会迅速变成新的天花板。病毒载体效率高,却又受制于装载容量、免疫原性和长期安全性。于是,一个很直接但也很大胆的问题出现了:能不能不再改造现有病毒,也不再只优化脂质配方,而是从零开始“造一辆RNA运输车”?
2026年9月2日,Helmholtz Munich、慕尼黑工业大学等团队在Nature在线发表研究: 利用人工智能设计的合成蛋白组装体,可以从零开始重新构建为高效的RNA转运载体。作者把天然病毒长期进化形成的递送功能拆解为若干基础模块,再与生成式AI设计的非天然蛋白组装体组合,构建并测试了100多种synthetic transfer vehicles(STVs)。其中最优的STV-C8,在作者设定的HEK293T体外基准比较体系中,EGFP mRNA转染阳性率较采用ALC-0315的临床LNP体系高出1,000倍以上;达到相近EGFP蛋白表达水平时,所需mRNA剂量低10,000倍以上。需要强调,这些倍数来自特定体外实验条件,不能直接外推为人体或体内治疗优势。更重要的是,该体系不仅能递送报告mRNA,还能递送CRISPR编辑器、Cas13抗病毒系统和转录因子RNA,并进一步完成小鼠体内表达分布、DMD患者来源肌细胞以及猪体内基因编辑验证。
图1. 从天然病毒到AI设计STV:载体架构与多维筛选体系
展示天然病毒衣壳与AI设计蛋白组装体的结构差异、STV模块化架构,以及对“颗粒释放—细胞摄取—RNA递送”三项关键性能的分层筛选逻辑。
这篇工作最值得关注的部分
第一点:把病毒递送逻辑拆开重做
这项工作的底层逻辑非常漂亮。天然包膜病毒通常需要完成几件事:把结构蛋白定位到细胞膜,装载核酸,招募细胞出芽机器形成囊泡,再利用表面融合蛋白进入下一批细胞。作者并没有完整复制某一种病毒,而是把这些功能拆成模块:膜结合结构域负责把系统拉到细胞膜;synthetic late-budding domain(SynL)用多种病毒来源的ESCRT招募基序促进出芽;Pseudomonas噬菌体PP7来源的tandem coat protein(tdPCP)负责识别带PP7信号的cargo RNA;真正决定“骨架长什么样”的,则是RFdiffusion设计出来的对称蛋白组装体。
研究团队建立了一套基于荧光素酶的多维筛选流程,可分别、独立地定量每个候选构建体的三个关键参数:(1)载体从生产细胞中的释放,采用HiBiT标签/LgBiT互补实验检测;(2)载体进入靶细胞的摄取效率,通过分裂NanoLuc重新组装进行检测;(3)RNA载荷递送效率,通过递送mRNA后分裂型萤火虫荧光素酶重新组装来评价。
第二点:STV-C8被拆成了可优化的四个功能层
作者最终筛出的STV-C8,由UaPHPLC、SynL、tdPCP和HE0690四部分组成。
-
UaPHPLC——膜结合结构域,用于驱动质膜定位并选择囊泡出芽位点。
-
SynL——来源于病毒ESCRT招募基序的合成出芽结构域,可招募宿主ESCRT机器并促进囊泡切割与释放。
-
tdPCP——来源于假单胞菌噬菌体PP7的串联二聚体衣壳蛋白,作为RNA结合模块使用(见第3.3节)。
-
HE0690——由AI工具RFdiffusion设计的C8(八重环状、平面型)对称蛋白组装结构域,通过寡聚化形成出芽核心并促进囊泡形成。
结构和生物物理表征结果——包括冷冻电子断层扫描、天然PAGE以及AlphaFold3八聚体结构预测——显示,STV-C8能够自组装形成直径约50–300 nm的囊泡,其中最常见直径约为110 nm;每个囊泡内包含多个约22 nm的蛋白寡聚体组装结构。对纯化颗粒进行蛋白质组学分析后发现,ESCRT通路蛋白显著富集,这与真实的主动出芽机制一致,而非被动的囊泡脱落。由于tdPCP朝向HE0690核心的外侧,作者据此认为STV-C8将RNA包装在蛋白寡聚体的外表面,而外围脂质膜则为RNA载荷提供物理保护。这种包装拓扑结构与天然病毒衣壳不同,后者通常将基因组封装于蛋白壳内部。
这种“表面包装”结构可能还解释了STV-C8的另一项显著特性:对于长度1–10 kb的不同RNA载荷,研究未发现明确的装载上限。相比之下,AAV等病毒载体由于具有刚性的衣壳内部空间,因此存在严格的包装容量上限。
第三点:与临床LNP(ALC-0315)及其他遗传编码载体的体外对比
这篇文章最容易被传播的一组数字,是STV-C8与临床LNP的正面对比。作者使用BNT162b2中使用的离子化脂质ALC-0315构建LNP,装载EGFP mRNA,并在HEK293T等细胞体系中进行滴定比较。按照转染阳性率计算,STV-C8的RNA转运效率高出1,000倍以上;若以达到相同EGFP表达水平所需的mRNA剂量衡量,STV-C8所需RNA量则低10,000倍以上。
免疫激活数据:未修饰体外转录mRNA会强烈触发先天免疫,而作者发现细胞内产生并由STV-C8包装的RNA,在A549 IFN报告细胞中没有引起可检测的干扰素信号,其表现更接近N1-甲基假尿苷修饰mRNA。这个结果提示“RNA在哪里被生成、如何被装载”本身也可能影响先天免疫识别。
第四点:靶向是可以继续用AI设计受体结合器
如果STV-C8只能高效进细胞,它仍然只是一个“强转染工具”;真正让它具有平台价值的是可编程tropism。作者在颗粒表面加入了计算设计的EGFR或IL-7Rα minibinder,并配合削弱天然受体结合能力的VSV-G突变体。结果显示,携带不同minibinder的STV-C8会优先进入表达对应受体的细胞;当目标细胞同时表达两个受体、颗粒也同时携带两类binder时,摄取还能进一步增加。
这一步与传统靶向LNP的思路有相似之处,但工程路径不同。LNP通常需要后插入PEG-配体、抗体偶联或重新设计脂质组成,而STV-C8的受体识别元件本质上也是蛋白编码模块,可以和载体一起通过遗传构建表达。理论上,这使“骨架—RNA识别—膜融合—受体靶向”都进入同一套可编程设计框架。对于需要细胞型特异性的mRNA治疗、体内细胞重编程和基因编辑,这种统一的模块化体系尤其有吸引力。
第五点:这个平台把RNA本身也做成了“可识别货物”
STV-C8之所以能在复杂的细胞转录本背景中选择性富集目标RNA,并不是简单地把细胞内RNA随机包裹。作者在cargo RNA中引入PP7 packaging signal,再利用STV中的tdPCP进行特异识别。对于Cas13d-NCS,PP7信号被加入Cas13d-NCS mRNA的3′UTR以及靶向SARS-CoV-2的crRNA;对于Cas9系统,Cas9 mRNA和两条靶向dystrophin exon 51两侧内含子的sgRNA也均被设计为可被PP7/tdPCP体系识别,从而实现编码RNA与功能性小RNA的共同装载。也就是说,这个平台的“RNA设计”不是事后附属步骤,而是载体选择性包装机制的一部分。
第六点:作者没有只停留在EGFP,而是把“能装什么、能做什么”一路推到了疾病模型
文章后半部分很像一份递送平台的压力测试。STV-C8可以递送EGFP和Cre等报告RNA,也可以递送OpenCRISPR-1或Cas9/sgRNA完成基因编辑;可以把ASCL1转录因子mRNA送入原代小鼠星形胶质细胞;还能把Cas13d-NCS和针对SARS-CoV-2的crRNA共同递送到iPSC来源的人肺细胞中,几乎完全压制病毒复制。
作者还专门选择了一些通常比肿瘤细胞系更难递送的模型。人外周单核细胞、iPSC来源的视网膜色素上皮球体、原代猪成纤维细胞都被纳入测试。RPE球体实验中,EGFP表达不仅停留在外层,内层细胞也能观察到信号,说明颗粒具有一定的组织样结构穿透能力。在猪原代成纤维细胞中,STV-C8递送Cas9/sgRNA,对dystrophin exon 51两侧进行切割,得到约40%的缺失频率。对于一个刚从人工蛋白骨架筛选出来的新型递送系统来说,这种跨RNA类型、跨细胞类型、跨物种的验证强度相当少见。
图2. STV-C8跨细胞类型递送多类RNA并完成不同功能验证
涵盖RPE球体和人原代单核细胞的EGFP递送、原代小鼠星形胶质细胞的ASCL1表达、猪成纤维细胞dystrophin exon 51编辑,以及Cas13d-NCS在iPSC来源人肺细胞中的抗SARS-CoV-2功能。
第七点:小鼠体内出现了一个意外但很重要的结果——肺部EGFP表达显著,肝脏未检测到表达
多数静脉注射LNP常呈现明显肝脏富集,因此作者将STV-C8(EGFP)静脉注射到小鼠后,采用全身透明化与光片显微成像,在接近单细胞分辨率下观察STV-C8介导的EGFP表达分布。结果非常醒目:EGFP信号高度集中于肺,而肝脏未检测到表达;肺内信号还呈点状分布,提示其在肺组织内部可能进一步偏向特定细胞亚群。这里需要区分“载体颗粒的物理分布”和“功能性mRNA表达分布”:论文直接展示的是STV-C8介导的EGFP表达位置,并未据此完整解析颗粒本身在各器官中的绝对药代分布。
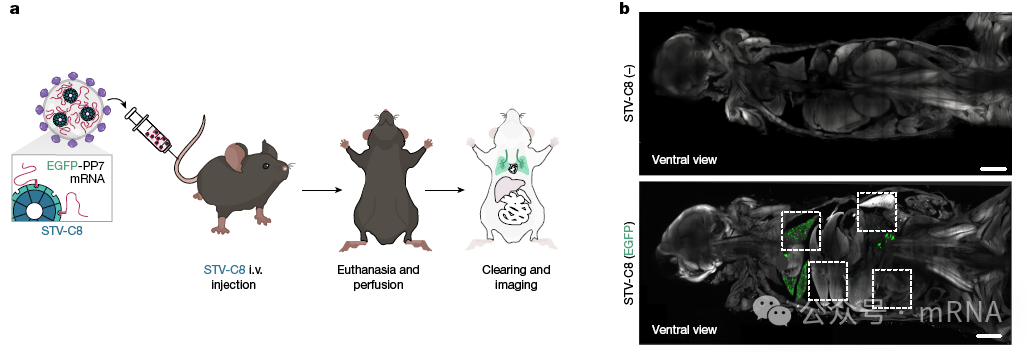
图3. 小鼠静脉注射STV-C8后全身透明化成像显示肺部优先的功能性表达
小鼠静脉注射STV-C8(EGFP)后72小时进行全身透明化与光片成像;EGFP表达主要位于肺部,而肝脏未检测到表达。该图反映的是功能性mRNA表达分布,而非完整颗粒药代分布。
第八点:实验设计也很值得借鉴:作者没有只看“荧光亮不亮”,而是把递送拆成生产、装载、进入、表达和功能五层验证
很多新型递送体系最容易出现的问题,是把终点荧光当成全部答案。这篇文章的实验链条更完整。首先在生产端,用HiBiT、RT-qPCR和上清颗粒分析判断STV是否真正释放;第二层看“装了什么”,通过绝对RT-qPCR、RNA-seq和蛋白质组学确认cargo富集与ESCRT相关成分;第三层用cryo-ET、native PAGE和AlphaFold3模型验证组装结构与粒径;第四层才进入靶细胞,结合流式、split-luc实时摄取和IFN reporter区分“颗粒进入”“RNA表达”和“免疫激活”;最后再用PCR、Sanger、长读长测序以及病毒抑制等功能终点证明货物真的完成了生物学任务。
第九点:从DMD患者细胞到猪肌肉,作者真正试了一次“治疗型RNA递送”
为了证明STV-C8不仅是研究工具,作者将体系推进至Duchenne muscular dystrophy(DMD)相关基因编辑。此前研究已在DMD猪模型中证明,CRISPR介导的dystrophin exon 51删除可恢复开放阅读框并改善肌肉与心脏表型。在本研究中,作者将Cas9 mRNA与两条靶向exon 51两侧内含子的sgRNA共同装载入STV-C8,并在一只野生型猪的骨骼肌中进行局部注射。72小时后,PCR和Sanger测序证实exon 51发生删除;扩展数据中的Nanopore长读长测序进一步用于估算局部注射位点的删除效率。局部肌肉炎症相关指标亦未显示明显诱导。
更接近临床的一步,是作者使用DMD患者来源、缺失exon 52的肌细胞。STV-C8(Cas9/sgRNA)处理后同样完成了exon 51删除,并恢复了DMD转录本的开放阅读框。必须指出,局部肌肉注射并不能解决DMD这种全身性肌病的临床给药问题,论文自己也明确承认,未来仍需解决系统性肌肉递送和细胞型选择性。
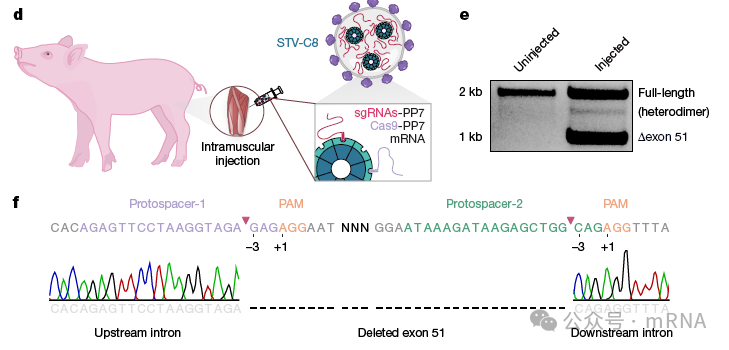
图4. STV-C8在猪骨骼肌中递送Cas9/sgRNA并实现dystrophin exon 51删除
STV-C8(Cas9/sgRNA)局部注射猪骨骼肌后72小时,PCR显示exon 51删除产物,Sanger测序进一步验证删除连接位点;扩展数据另以Nanopore测序估算局部编辑效率。
这项研究真正改变了什么?
如果把这篇Nature只概括成“新型mRNA载体比LNP高效”,反而低估了它。它更大的价值,是给RNA递送提供了一套新的工程学坐标系。
第一,载体不再局限于脂质化学空间或天然病毒序列空间。生成式AI可以提供大量自然界不存在的蛋白对称结构,递送性能可以通过高通量筛选与结构设计共同优化。第二,载体开始从“材料配方”走向“功能模块编程”。膜定位、RNA选择性装载、出芽、融合、靶向都可以独立调节,这种设计方式与合成生物学非常接近。第三,它把RNA药物的货物边界拉得更宽:mRNA、sgRNA/crRNA、基因编辑器和多顺反子转录因子都能被纳入同一个平台。第四,体内肺选择性说明,AI设计蛋白颗粒可能形成完全不同于LNP的器官分布规律,这为肝外递送打开了新的路线。
当然,STV-C8距离真正替代LNP或病毒载体仍有很长距离。当前体系依赖生产细胞生成膜性囊泡,未来必须解决制造放大、纯化、批间一致性、宿主细胞残留与关键质量属性等问题;VSV-G以及人工蛋白组装体在重复给药后的免疫原性仍需系统评估;肺部功能性表达的细胞来源和决定机制尚不清楚,针对肌肉、免疫细胞或其他组织的全身靶向也尚未完成。尤其需要避免把体外“千倍/万倍”的基准优势直接等同于体内治疗窗或临床疗效优势。
但这恰恰也是这项工作的前沿性所在:它没有给出一个已经成熟的临床产品,而是打开了一个新的递送材料类别。
结语
从LNP到AAV,再到今天的STV-C8,RNA递送技术正在从“利用天然或化学材料”进一步走向“主动设计功能”。这项工作的冲击力不只来自某一个倍数,而在于它证明:生成式AI设计的非天然蛋白组装体不仅可以在结构上稳定存在,还能够被赋予RNA选择性装载、囊泡出芽、细胞进入和可编程靶向等复杂运输功能,并在动物体内完成与治疗相关的基因编辑验证。
参考文献
[1] Schuhmacher MK, Gruber C, Lang CMR, et al. Creating bottom-up RNA transfer vehicles from synthetic protein assemblies. Nature. 2026. doi:10.1038/s41586-026-10952-3.
[2] Watson JL, Juergens D, Bennett NR, et al. De novo design of protein structure and function with RFdiffusion. Nature. 2023;620:1089–1100.
[3] Schuhmacher MK, et al. STV-C8 related patent application WO2026068725A1 (as disclosed in the Nature article competing-interests statement).


 沪公网安备 31011002003500
