
做抗体靶向LNP的人都知道,真正麻烦的往往不是“有没有一个好抗体”,而是怎么把抗体稳定、可控、方向正确地装到LNP表面。传统路线通常要给LNP引入Maleimide、DBCO、NHS等反应基团,再对抗体做巯基化、叠氮化或定点改造。做小规模实验当然可以,但一旦往工艺放大走,偶联效率、抗体方向、游离抗体去除、批间一致性和颗粒稳定性都会一起冒出来。Pfizer团队2026年发表在Molecular Pharmaceutics的这篇文章,给了一个非常“省事”的答案:别再把抗体共价焊到LNP上,让一支双特异性抗体自己当“转接头”。
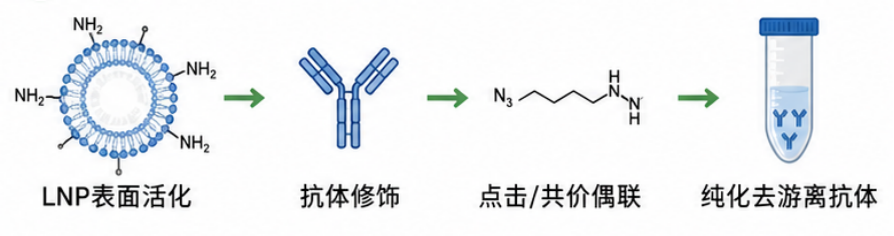
图1. 传统抗体偶联LNP
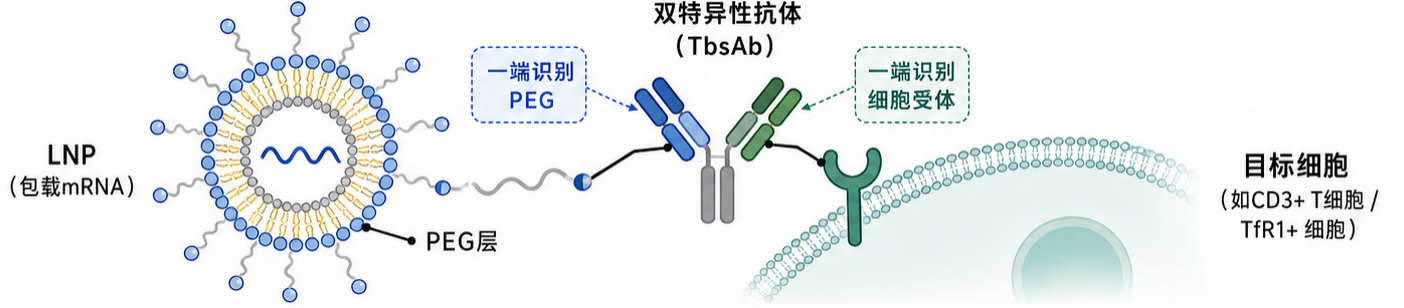
图2. 平台化运作的双抗LNP(不用共价偶联,也能把”普通LNP”变成“靶向LNP”)
这套体系被作者称为targeting bispecific antibody-LNP,也就是TbsAb-LNP。它的逻辑极其直接:双抗的一端识别LNP表面的PEG基团,另一端识别目标细胞表面受体。两边一拉,原本没有细胞特异性的mRNA-LNP就被临时“拴”到目标细胞上。严格来说,这并不是传统意义上的共价“抗体偶联LNP”,而是一种基于抗体亲和作用形成的非共价双抗-LNP复合物。恰恰因为不需要额外的点击化学、还原/巯基化或偶联后纯化,这篇工作的工程价值反而很突出。
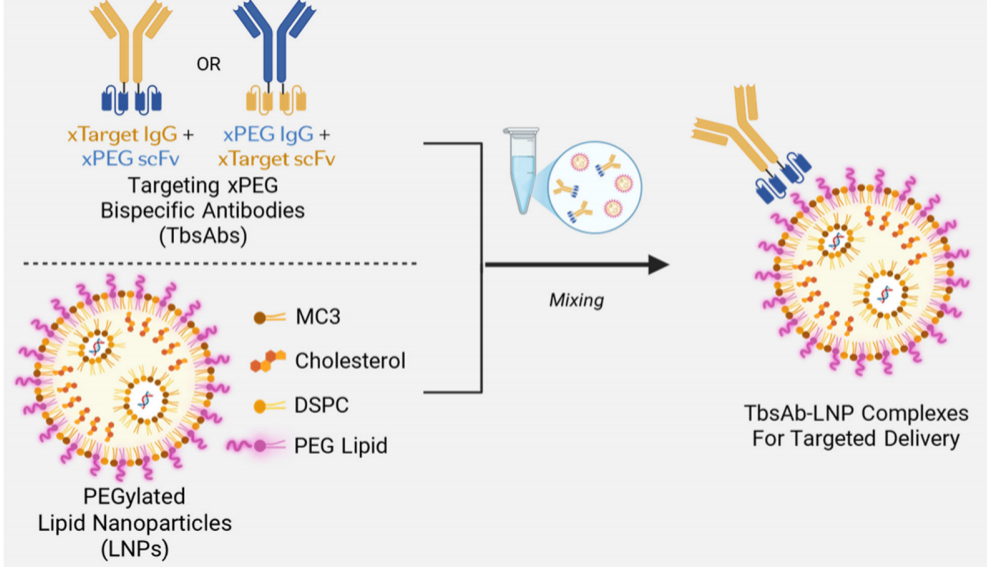
图3. 双特异性抗体LNP制备
这篇文章,几个重要的且印象很深的点:
第一,把PEG从“隐身层”直接变成了“标准接口”。
过去PEG-lipid在LNP里主要负责降低非特异性相互作用、调节粒径和提高胶体稳定性;在这套设计里,PEG又多了一重身份——双抗的通用 docking site。作者设计的TbsAb同时识别LNP PEG motif和目标细胞表面标志物,这意味着基础LNP本身不必为了每一个新靶点重新进行化学修饰。换靶点时,理论上只需要替换双抗的细胞识别端,而“抓LNP”的一端保持不变。对于平台化开发来说,这个思路非常巧妙:把原本结合在一起的“LNP制剂开发”和“靶向配体开发”拆开了。
第二,真正漂亮的不是“能粘上”,而是研究双抗装多少才合适。
靶向纳米颗粒常见的误区是:表面抗体越多,靶向一定越强。但实际情况远没有这么简单。抗体密度过低,可能抓不住目标细胞;密度过高,又可能增加颗粒尺寸、改变表面性质,甚至让颗粒进入细胞后卡在内体里。作者因此系统比较了不同TbsAb/PEG装载比例,并把“表面结合—细胞摄取—内体逃逸—mRNA表达”放在同一条链路里观察。这个设计比单纯测流式摄取强得多,因为真正决定RNA药物有没有用的,不是颗粒有没有进细胞,而是mRNA最后有没有跑进胞质。
第三,本文利用Galectin-9内体逃逸模型,是一个很值得借鉴的方法学亮点。
Galectin-9在完整内体中通常接触不到腔内糖基化结构;当内体膜受到破坏时,它会迅速募集形成可成像的斑点,因此可以把“内体膜被LNP扰动”做成时间分辨的读数。作者利用Gal9表达模型追踪不同双抗装载比例下TbsAb-LNP的内体处理动力学,还结合荧光标记mRNA/LNP观察颗粒共定位。换句话说,这篇工作不只是问“靶向抗体有没有把LNP拉到细胞表面”,还继续追问“拉进去以后,LNP还能不能完成最难的一步——内体逃逸”。这一点非常关键,因为主动靶向经常提高摄取,却未必同步提高功能性mRNA表达。
第四,作者不只在一个靶点上做研究,而是用了两套完全不同的受体系统做交叉验证。
针对human CD3的TbsAb用于xhuCD3表达的淋巴母细胞,代表典型的T细胞递送场景;针对mouse TfR1的TbsAb则用于xmTfR1表达细胞,并进一步走到小鼠体内。这样设计的好处是,它证明平台的核心并不是某一个特殊抗体或某一种细胞,而是“双抗桥接LNP”这一模块本身具有可替换性。文章最终观察到xmTfR1 TbsAb-LNP在体内能够对相关细胞产生靶向递送,并出现脾脏细胞富集,这也让平台自然指向两个很热门的方向:疫苗免疫细胞递送,以及T细胞原位工程。
双抗-LNP的底层逻辑:一头抓PEG,一头抓细胞。
传统抗体-LNP要先改抗体、改LNP,再做化学反应和纯化;TbsAb-LNP则把双抗直接作为分子桥。一端识别LNP表面的PEG motif,另一端识别CD3、TfR1等细胞受体,通过生物亲和作用把“普通LNP”瞬间变成“靶向LNP”,是“标准LNP + 可替换双抗”的平台化组合。
CD3场景验证:先证明它真的能把mRNA带到目标淋巴细胞。
本文在xhuCD3表达的淋巴母细胞体系中验证TbsAb-LNP。这里最重要的对照逻辑应该看三个层面:没有靶向双抗时基础LNP的背景递送、加入匹配TbsAb后的目标细胞表达提升,以及靶点不匹配条件下的特异性。结果显示,该平台能够实现对xhuCD3表达细胞的靶向mRNA递送。对于后续in vivo CAR-T而言,这类结果的真正价值不是“多亮一点”,而是证明成熟LNP可以通过外加一个可编程抗体模块改变细胞选择性。
TfR1场景把平台从“一个靶点”推成“通用方法”。
TfR1是经典的高内吞受体,也经常被用于跨膜和递送研究。本文使用xmTfR1靶向双抗,在表达该受体的细胞系中测试不同TbsAb/PEG比例,并把细胞摄取和mRNA表达放在一起比较。这里带出的一个更普遍结论是:靶点选择不能只看受体“表达高不高”,还要看受体是否容易内吞、内吞后走哪条胞内运输路径,以及是否有利于LNP进入能够发生有效内体逃逸的区室。
Gal9把“靶向效率”拆成了胞内动力学问题。
文章在mTfR1过表达的Gal9-mCherry HeLa模型中进一步分析TbsAb-LNP的内体逃逸动力学,并在补充材料中展示了约300 min时Gal9、Cy5标记LNP/EGFP mRNA相关信号的共定位。这个方法给抗体-LNP开发提供了一个很实用的评价框架:以后比较不同抗体、不同偶联密度或不同PEG-lipid时,不要只测“总摄取”,还应该同步测Gal9 recruitment、功能性蛋白表达和细胞毒性,把“进去多少”和“出来多少”分开。
真正有转化意味的是体内脾脏富集。
文章进一步用xmTfR1 TbsAb-LNP做小鼠体内递送,并通过生物发光及扩展的组织分布分析评估功能表达。结果显示,TbsAb-LNP可在体内实现xmTfR1相关靶向,并在脾脏细胞中出现富集。作者因此提出,这一平台可能适用于疫苗以及T细胞递送。需要注意的是,这篇文章目前主要证明的是“递送平台成立”,并没有像in vivo CAR-T研究那样继续做到明确疾病疗效终点;但恰恰因为它把组装、靶向和内体机制做得比较系统,更像是在搭一个后续可以不断换抗体和mRNA cargo的底盘。
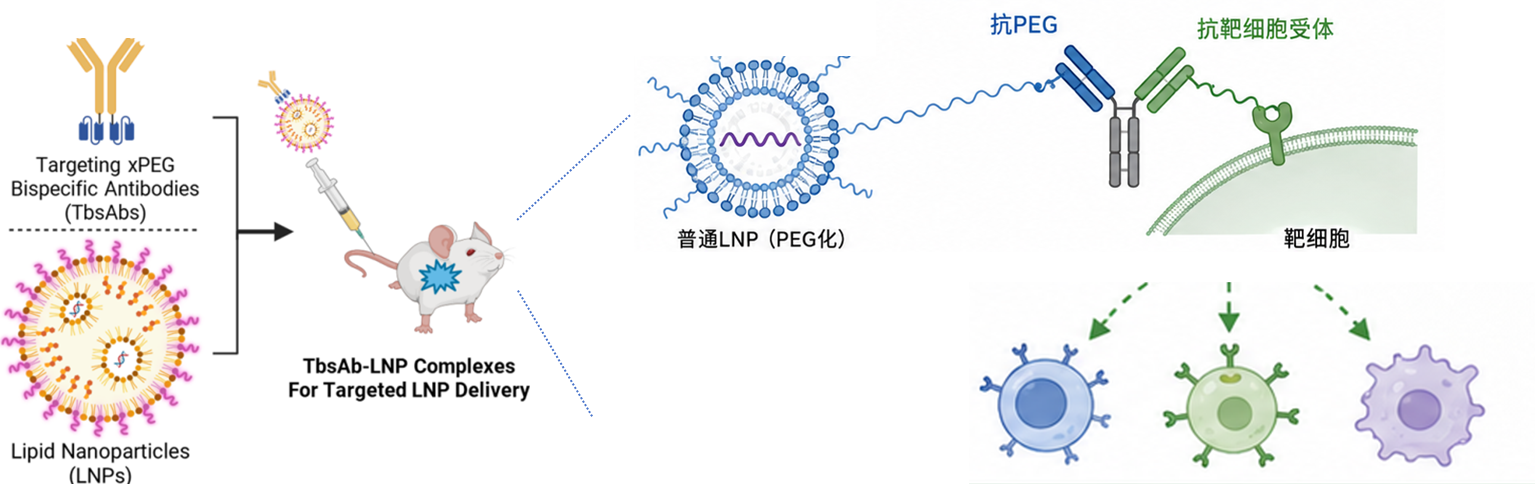
图4. 双特异性抗体LNP工作流程图
双抗靶向LNP领域的其它重要研究:
把这篇文章放回抗体靶向LNP领域,会发现“双抗做桥”正在形成一条非常清楚的新路线。2025年昆士兰大学Dietmair等人在Molecular Therapy–Nucleic Acids报道,双抗可以一端识别LNP,另一端识别EGFR或PSMA;甚至可以先把双抗给药,让它先占据靶细胞,再用LNP作为第二针去“捕获”,实现肝外细胞特异性mRNA递送。与Pfizer这篇工作相似,它们共同强调一个趋势:靶向模块不一定非要成为LNP的永久化学组成,完全可以做成可拆卸、可替换的生物学适配器。
另一项非常接近的工作来自Amabile、Dong和Brown团队的bioRxiv预印本。他们没有直接抓PEG,而是在PEG组分里嵌入一个短HA表位,再用“抗HA × 细胞靶点”的双抗做桥,先后验证了PD-L1、CD4、CD5和SunTag等靶点。该体系在体内对PD-L1阳性癌细胞的转染提高约4倍,在静息原代人T细胞的ex vivo转染中提高约26倍;作者还做了一个更“万能”的版本,用抗HA × anti-rat IgG2双抗去接市售CD4、CD8、CD20、CD45、CD3抗体。这个设计和Pfizer路线的区别很有意思:前者需要在LNP PEG上预埋HA docking tag,后者直接把PEG本身当接口。一个更像“标准插座”,一个更像“直接夹住电线”,但目的完全一致——绕开复杂共价偶联。
工艺角度分析:从工艺角度看,这种“非共价桥接”还有一个常被低估的优势:它可能把抗体靶向LNP从“复合制剂”变成更接近“两种标准化组件的现场组装”。传统Maleimide-巯基、SPAAC或其它定点偶联路线,必须同时管理抗体修饰度、活性基团水解、偶联时间、游离抗体去除以及最终LNP回收率;任何一步变化,都可能把粒径、PDI、抗体密度和靶向活性一起带偏。TbsAb-LNP如果能在生理缓冲液中通过简单混合形成稳定复合物,理论上可以把LNP和双抗分别作为可独立放行的中间体,再通过固定的TbsAb/PEG比例完成终端组装。对于早期研发,这意味着换靶点不需要重做一整套脂质化学;对于CMC,这意味着未来有机会把关键质量属性拆成“LNP质量”“双抗质量”和“复合物组装质量”三层来管理。当然,这一优势目前更多属于工程推演,真正进入IND前仍需要用血清稳定性、长期储存、冻融和放大批次数据去验证。
区分“双抗靶向LNP”和“LNP递送编码双抗mRNA”:一种是“用双抗靶向LNP”,也就是本文的TbsAb-LNP——双抗在颗粒外面充当导航器,决定mRNA送给谁;另一种是“LNP递送编码双抗的mRNA”,例如B7H3×CD3、CLDN6×CD3等mRNA双抗项目——这时LNP只是把mRNA送进肝脏或其它生产细胞,让机体自己制造双抗蛋白。前者解决的是递送选择性,后者解决的是抗体生产和暴露时间。两条路线未来甚至可以叠加:用细胞靶向TbsAb-LNP把“编码另一种治疗性双抗或CAR”的mRNA送到指定免疫细胞,让双抗既负责导航,又让mRNA负责重编程。不过,Hickey这篇文章本身还没有做到这一层,因此更准确地说,它提供的是一个可以承接这些payload的递送底盘。
递送和内吞逃逸思考:对于T细胞递送来说,CD3验证只是一个很好的起点,但未必代表最终最优靶点。越来越多靶向LNP研究提示,受体丰度和递送效率并不是简单正相关:一个表面表达很多、却内吞缓慢或进入快速回收通路的受体,可能不如表达稍低但内吞快、能把颗粒送进有利于内体逃逸区室的受体。也就是说,抗体筛选不能只做KD、流式MFI和结合曲线,还应加入受体内吞半衰期、胞内分选、Gal9 recruitment、mRNA翻译以及细胞功能读数。Hickey团队把TfR1和Gal9模型引入同一篇文章,实际上已经隐约给出了这个方向:未来“最佳靶向抗体”的定义,不是结合最强,而是能把LNP带进最合适的胞内路线。
容易忽略的转化问题:“靶向成功”以后是否会改变整颗LNP的药代行为。双抗结合PEG后,颗粒表面会从相对惰性的聚合物层变成带有大型蛋白结构的生物界面,血浆蛋白吸附、网状内皮系统识别、脾脏滞留和重复给药后的清除都可能随之变化。因此,后续不能只比较目标细胞转染比例,还应该同步记录血液暴露、主要器官分布、细胞亚群转染和炎症指标。特别是当平台用于T细胞工程时,理想状态并不是“全身表达最高”,而是用尽可能低的总mRNA剂量换取足够高的目标T细胞转染,同时把肝细胞、髓系细胞和其它非目标组织的表达压到最低。这个评价思路,也正是双抗桥接LNP从实验室工具走向真正精准递送药物必须跨过的一步。
本策略面临的问题及思考:
第一,非共价组装虽然省工艺,但进入高稀释、复杂血清环境后,双抗-LNP复合物到底能保持多久,需要系统PK和结构完整性验证。
第二,PEG被双抗占据后,原本的“隐身”功能、蛋白冠以及清除行为是否会发生变化,也值得单独研究;尤其重复给药场景下,PEG相关免疫学问题不能忽略。
第三,真正决定靶向效率的可能不是受体表达量,而是受体内吞速度和胞内分选命运,因此未来筛靶点时,需要把“受体生物学”放到和“抗体亲和力”同等重要的位置。
第四,平台还需要建立适合工艺放大的质量属性,包括TbsAb/PEG占有率、游离双抗比例、复合物稳定性、粒径/PDI变化以及功能性内体逃逸。
这篇文章最值得记住的一句话,可以概括成:不要再把“抗体偶联”理解成一定要形成一根共价键。对于mRNA-LNP,真正需要的是一个足够稳定、足够模块化、又能把颗粒带到正确细胞并保持内体逃逸能力的“连接关系”。Pfizer这套TbsAb-LNP把PEG变成通用接口,把双抗变成可替换导航头,相当于把传统抗体-LNP从一次性定制产品,往“平台型靶向系统”推进了一步。它现在还不是终点,但很可能代表抗体靶向LNP下一阶段最值得关注的工程化方向之一。
参考文献
[1] Hickey JC, Roach T, Cassaidy B, et al. Targeted mRNA Delivery Using Bispecific Antibody-Lipid Nanoparticle Complexes. Molecular Pharmaceutics. 2026;23(8):4190-4202. doi:10.1021/acs.molpharmaceut.6c00239.
[2] Dietmair B, Humphries J, Mercer TR, et al. Targeted mRNA delivery with bispecific antibodies that tether LNPs to cell surface markers. Molecular Therapy - Nucleic Acids. 2025;36(2):102520. doi:10.1016/j.omtn.2025.102520.
[3] Amabile A, Phelan M, Yu Z, et al. Bispecific antibody targeting of lipid nanoparticles. bioRxiv. 2024.12.20.629467. doi:10.1101/2024.12.20.629467. (preprint)
[4] Rurik JG, Tombácz I, Yadegari A, et al. CAR T cells produced in vivo to treat cardiac injury. Science. 2022;375(6576):91-96. doi:10.1126/science.abm0594.
[5] Munson MJ, O'Driscoll G, Silva AM, et al. A high-throughput Galectin-9 imaging assay for quantifying nanoparticle uptake, endosomal escape and functional RNA delivery. Communications Biology. 2021;4:211. doi:10.1038/s42003-021-01728-8.


 沪公网安备 31011002003500
